Grid cells 深度介紹:從六角放電到路徑整合假說
你在台北第一次走進一個陌生捷運站時,腦中同時做了幾件事:估計自己站在哪裡、知道面向哪個方向、整合剛剛走了幾公尺,還要把出口、牆和轉角放進同一個空間關係裡。這不是一張手機地圖在腦內亮起來,而是許多神經元用不同方式共同表示「我在哪裡,以及我怎麼到下一個地方」。
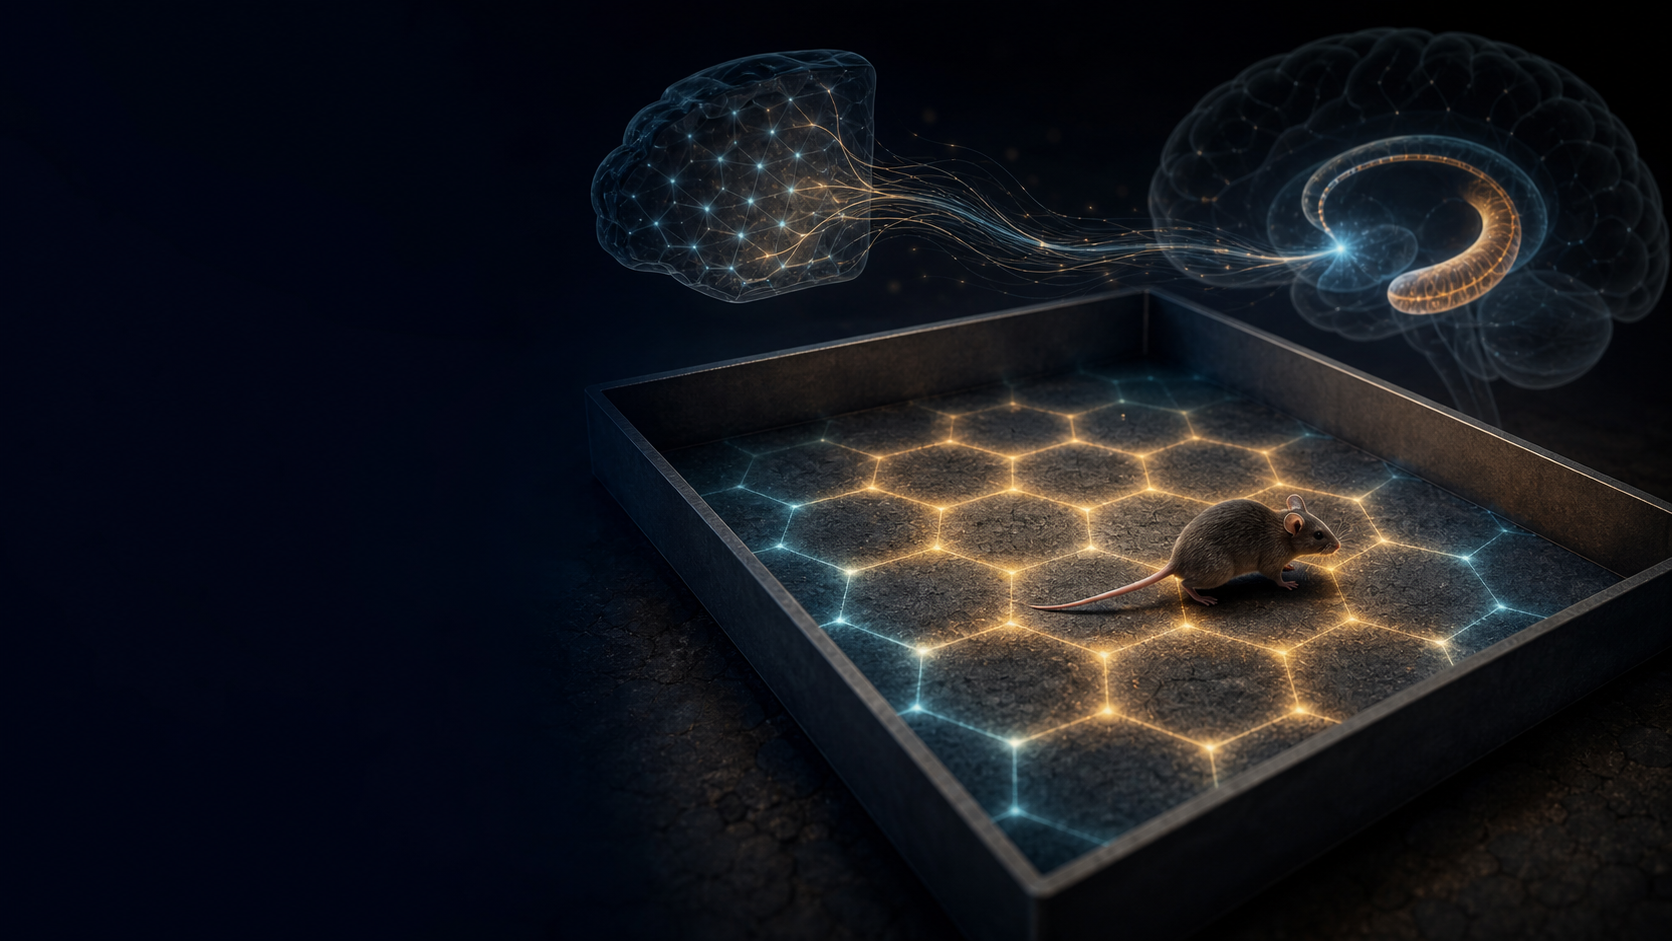
Grid cell(網格細胞)是這套系統裡最反直覺的成員:同一個神經元會在許多位置放電,而這些位置通常排成近似規則的晶格。六角/六重對稱描述的是整體放電位置的排列,不是每個 firing field(放電場)本身長成六角形。單一 grid cell 比較像一張重複鋪設的座標紙,而不是一個定位圖釘。
這項發現把問題從「動物如何在空間中行動」推進到「神經迴路如何表示空間」。本文會先說清楚 grid cell 到底是什麼,再沿著重要論文追蹤它如何被解讀為週期性空間表示、path integration 的候選基礎,以及海馬迴—內嗅皮質迴路與 AI 導航研究的共同問題。
讀這條研究線時,最好把三種證據分開:放電場與 grid score 是實驗觀察;活動 bump 平移、多尺度解碼與振盪干涉是計算模型;「grid cells 支援路徑整合或抽象表徵」則是由前兩者提出的功能假說。下面會刻意標出這些層級,不把模型的可行性當成生物機制已被證明。
先把 grid cell 和 place cell 分開
1971 年,John O’Keefe 與 Jonathan Dostrovsky 發現 hippocampus(海馬迴)裡有些神經元,會在老鼠位於環境中的特定區域時增加放電;這個區域稱為 place field(位置場),神經元稱為 place cell(位置細胞)。不同 place cell 可以對應同一個房間裡不同位置,群體活動合起來,像一組稀疏的「我現在在哪裡」標記。Nobel Prize 的科學背景
Grid cell 的活動形式不同。它的 firing field 不是一個,而是很多個;這些放電場在空間中呈週期排列。對一個細胞來說,動物可能在左上、中央、右下等多個位置都觸發它。多個尺度、方向和相位的週期碼,理論上可以組成可解碼的群體表示;這是重要的計算解釋,不是單一細胞實驗直接測得的能力。
可以用一個不完全精確、但有用的工程比喻來理解:place cell 像是地圖上的一個地標;grid cell 像是多組不同間距的座標格。只有一組格子會有週期性的歧義,因為相隔一個週期的兩個位置看起來一樣;把數個尺度不同的格子疊在一起後,群體活動的聯合模式理論上能減少這些歧義。這也是為什麼「單一 grid cell 不是座標系統」;真正的座標資訊存在於 population code(群體編碼)裡。
發現:從多重位置場到六角晶格
Grid cell 的前身其實出現在 2004 年。Fyhn 等人在 Science 報告,內嗅皮質(entorhinal cortex)靠近 postrhinal–entorhinal 邊界的神經元,會出現穩定、離散而且多峰的空間放電場;這些細胞的空間調制可以媲美海馬迴 place cells。Fyhn et al., 2004
真正讓這個現象成為一個新細胞類型的,是 Hafting、Fyhn、Molden、May-Britt Moser 與 Edvard Moser 在 2005 年 Nature 的論文。他們在 rat 的 dorsocaudal medial entorhinal cortex(背尾側內側內嗅皮質,dMEC)記錄神經活動,發現某些細胞在動物通過多個位置時放電,而這些位置形成規則的三角形/六角晶格。更關鍵的是,這個圖樣能被外部地標固定,卻在移除地標後短時間內持續;這是與基於自我運動的 path integration(路徑整合)一致的現象,但不是對其生物機制的直接證明。Hafting et al., 2005
研究者把一個細胞的空間活動轉成 rate map(放電率地圖),再計算它的空間自相關。若六個相隔約 60 度的方向呈現相似週期結構,便會得到高的 grid score。這裡的「六角形」不是說每個神經元都畫出完美、無限延伸的蜂巢;它是有限環境、行為取樣與邊界影響下,從放電統計中辨認出的六重對稱性。
一個 grid cell 究竟在計算什麼?
1. 週期性 metric:把位移變成可重複的碼
對導航來說,最基本的內部問題不是「我看見哪個地標」,而是「從剛剛的位置往這個方向走一段距離後,我現在應該在哪裡」。這需要把方向與速度整合成位置更新:
x(t + Δt) ≈ x(t) + v(t) · Δt
生物神經系統不會真的把這行公式存成程式碼。這裡的 v(t) 是由方向與速度組成的位移向量;在一類模型中,不同 grid cells 的活動相位代表內部座標,速度訊號讓整個活動圖樣在神經網路中平移。這是模型對位置更新的描述,不是實驗已確認的電路機制。
這是支持 path integration 假說的核心直覺,也是 2005 年論文為什麼特別強調「外部地標消失後圖樣仍可維持」。它不代表 grid cells 完全不需要感覺輸入。較保守的說法是:內部運動訊號可能在一段時間內維持位置估計,外部地標則可用來校正累積誤差。單純靠速度積分會漂移;單純靠地標又無法在看不見地標時保持連續的位置感。
2. 多尺度 grid modules:用幾組週期碼降低歧義
Grid cells 並不是隨機地各自擁有一個 spacing(網格間距)。同一 functional module(功能模組)的細胞會有相近的 spacing 與方向,不同 module 則使用不同尺度。Nobel 的科學背景整理指出,這些模組從幾公分到公尺級距,覆蓋小到大的環境。Nobel Prize, 2014
一種有影響力的計算解釋是:粗網格可以在大範圍內提供尺度感,細網格則提供精細解析度;多個週期疊加後,只有在較大的共同週期才會完全重複。這不是說老鼠真的在做中國剩餘定理,而是說週期性表徵可能以相對少的神經元表示大範圍位置,同時保留局部精度。這段是 coding model 的詮釋,不是 Stensola 實驗直接測得的功能。
Stensola 等人在 2012 年 Nature 研究了 grid map 的組織,提出 grid scale 並非沿著內嗅皮質背腹軸連續平滑變化,而是落在離散的 modules 裡。Stensola et al., 2012 這個結果很重要,因為它把「漂亮的單細胞圖樣」提升成「多組協同工作的網路架構」問題。
3. 方向、速度與邊界:grid code 不是孤立的格子
Sargolini 等人在 2006 年 Science 顯示,內嗅皮質裡除了 grid cells,還有同時結合位置、頭部方向與速度的 conjunctive cells(聯合細胞);這些細胞主要出現在 MEC 的特定層,可能把移動方向與空間位移接在一起。Sargolini et al., 2006
速度訊號也不是一句「動物跑得越快,grid cell 放得越快」可以概括。Kropff 等人在 2015 年 Nature 分離出一群 speed cells(速度細胞):它們的放電率和奔跑速度呈正向、近似線性的關係,而且和 grid、head-direction、border cells 在功能上可區分。Kropff et al., 2015 這提供一個 path integration 所需輸入的候選來源:網路要知道自己移動了多快,才可能正確平移內部座標。
兩種主要理論:grid pattern 從哪裡來?
「grid cell 是什麼」和「grid pattern 如何產生」是兩個不同問題。第一個已有很穩固的觀察共識;第二個仍是理論神經科學的核心爭論。
Continuous attractor network:一個會平移的活動 bump
Fuhs 與 Touretzky 在 2006 年提出一個局部連接的 recurrent network:神經元之間的抑制性互動讓網路形成穩定的活動狀態,而速度與方向輸入讓活動狀態在二維神經表面上平移。這裡的活動 bump,是一小群活化神經元形成的活動峰;在模型中,它會隨位移穿過網路。這類 continuous attractor network(連續吸引子網路)能自發產生六角形的活動圖樣,但它首先是可行的模型,不是已確認的 MEC 迴路。Fuhs & Touretzky, 2006
Burak 與 Fiete 在 2009 年進一步分析 continuous attractor 如何進行路徑整合,並討論網路在噪聲與離散神經元下能達到的準確度。Burak & Fiete, 2009 這條路線的吸引力在於,它把「六角形」和「位置更新」放進同一個動力系統;缺點是,真正的生物迴路是否具備理論所需的精確連接,並沒有被完全證明。
Oscillatory interference:用速度調制的振盪干涉出空間週期
另一類模型從單細胞的振盪頻率出發:不同方向的速度訊號改變內部振盪,數個相位不同的振盪互相干涉後,在空間中形成週期性增強區。這類模型可以自然連到 theta rhythm(約 4–12 Hz 的海馬迴/內嗅皮質節律)與 phase coding(相位編碼);Burgess、Barry 與 O’Keefe 在 2007 年提出了這條路線的經典模型。Burgess et al., 2007
這兩類理論都能在某些條件下重現 grid-like firing,但它們對局部連接、速度輸入、單細胞膜電位與網路同步提出不同預測。2013 年的回顧指出,許多 grid-cell 性質支持 continuous attractor 的可能性,但真正的實作仍未定案;因此,把任何單一模型直接寫成「grid cells 的已知機制」是不準確的。Buzsáki & Moser, 2013
重要修正:它不是一個永遠不變的內部 GPS
「大腦內部 GPS」是很好的新聞標題,卻容易讓人以為 grid pattern 是完全獨立於環境、永遠等距、永遠六角對稱的幾何尺。後來的研究把這個直覺修正得更精確。
Krupic 等人在 2015 年 Nature 把老鼠放進不同幾何形狀的環境,發現 grid 的方向、尺度、對稱性與均勻性會受到邊界影響。在正方形環境裡,grid orientation 會和牆的方向對齊;在梯形環境裡,六角對稱性會被打破,圖樣變得更橢圓且不均勻。Krupic et al., 2015
這個結果不是「grid cells 失效」,而是提醒我們:grid code 不是脫離世界的理想座標。內部動力與外部邊界會共同影響 spatial metric(空間度量)的實際形狀;Krupic 的實驗直接支持的是,環境邊界幾何會改變放電圖樣,而不是已經證明 grid cells 本身編碼了所有門、障礙物與可走路徑。
海馬迴也不一定只是被動接收 MEC 格子的終端。Bonnevie 等人在 2013 年於暫時抑制海馬迴的條件下,觀察到 grid pattern 逐漸消失,而同一批細胞增加頭部方向調制;作者據此提出,來自海馬迴、也可能來自其他區域的 excitatory drive(興奮性驅動),是該條件下形成與移動 grid pattern 的一項前提。Bonnevie et al., 2013 這支持海馬迴對 MEC grid-like activity 有回饋影響,但單靠這個操弄不能證明所有 place cells 與 grid cells 都具有普遍的雙向功能因果。
從老鼠導航到人類與抽象概念
人類空間導航
2013 年,Jacobs 等人利用接受腦部手術、已植入電極的病人,在虛擬導航任務中直接記錄人類內嗅皮質與相關區域的單神經元活動。他們找到具有 grid-like spiking pattern 的細胞,結果支持人類可能也使用與其他哺乳動物同源的空間編碼方案;但因為是人類虛擬導航與臨床電極資料,較精確的說法是「grid-like activity」或「putative grid cells」,不要把它寫成和老鼠實驗完全等價。Jacobs et al., 2013
更早的 fMRI 研究已在虛擬導航中看到與 grid code 一致的六重方向調制;但這是群體 BOLD 的間接訊號,不是單一細胞記錄。Doeller, Barry & Burgess, 2010
非空間任務中的 grid-like activity
更大的問題是:grid-like code 是否只屬於物理空間?Constantinescu、O’Reilly 與 Behrens 在 2016 年 Science 讓受試者學習鳥類的抽象概念空間,發現 entorhinal cortex、腹內側前額葉等區域的 fMRI 活動呈現六重對稱的 grid-like 結構。Constantinescu et al., 2016 這是有影響力的結果,但它是群體 fMRI 的間接、模型依賴訊號,不是直接從單一人類神經元找到與老鼠相同的細胞機制。
Aronov、Nevers 與 Tank 在 2017 年則讓老鼠操作 joystick,沿著聲音頻率這個一維、非空間維度完成任務;他們在 hippocampal–entorhinal circuit 看到與已知空間 cell types 重疊的活動,提出這套迴路可能也能表示任務中有用的連續變數。Aronov et al., 2017 這項研究支持「某些非空間任務可能重用相似的關係式表徵」這個可能性,但不等於已證明存在通用的抽象 relational code。
Grid cells 對 AI 導航研究的影響
Grid cells 對部分神經啟發式 AI 導航研究的影響,不是提供一個可以直接複製的「腦神經演算法」,而是提出一個表示學習問題:一個 agent 能不能只靠速度與方向等 self-motion signals,維持可解碼的空間狀態?
Banino 等人在 2018 年 Nature 訓練 recurrent deep-learning agent 做路徑整合,網路的 hidden units 自發出現近似哺乳動物 grid cells 的六角形空間活動。在該訓練架構與特定導航基準中,這種 grid-like representation 提供了有效的導航基礎。Banino et al., 2018
這項工作是計算可行性的示範,不是生物機制的驗證。它顯示在特定任務裡,週期性空間表示可能有助於 metric navigation;但 grid-like units 的出現不證明哺乳動物大腦使用同一種學習規則,也不代表這種表示對所有導航任務都必要。模型的價值在於讓機制假說變得可操作、可失敗、可比較。
這項發現改變了什麼?
最直接的貢獻,是把空間從心理學裡的行為描述,推進成可量測的神經表徵。研究者可以對 firing map、spacing、orientation、phase 與 grid score 做定量分析;問題也因此從「動物有沒有空間記憶」變成「不同神經迴路如何表示位置與移動」。
在計算層面,grid pattern 提供了 path integration 的候選基礎:位置估計可能由速度、方向與網路狀態連續更新,再由感覺輸入校正。這是能被模型化和實驗反駁的假說,不是單靠六角圖樣就能推出的定理。
在系統層面,place、grid、head-direction、speed 與 border activity 讓研究者看到一個互相連接的 positioning system;2014 年 Nobel Prize 也以這套系統的發現表彰 O’Keefe、May-Britt Moser 與 Edvard Moser。Nobel Prize press release 後續的人類與 AI 研究,則把問題延伸到「相似的關係式表徵是否能在不同任務中重用」,但這仍是延伸假說,不是 grid cells 已被證明具備的通用功能。
重要論文:建議閱讀順序
如果只想建立一條可靠的閱讀路徑,可以先讀發現與組織,再讀模型,最後讀限制與跨域延伸。下面的清單刻意把「實驗觀察」和「計算解釋」放在一起對照。
發現與組織
- O’Keefe & Dostrovsky (1971), “The hippocampus as a spatial map” — place cell 論文,先建立「海馬迴如何表示位置」的問題。PubMed
- Fyhn et al. (2004), “Spatial representation in the entorhinal cortex” — 在 grid cell 命名之前,先看到內嗅皮質的穩定多重位置場。Science / PubMed
- Hafting et al. (2005), “Microstructure of a spatial map in the entorhinal cortex” — grid cell 發現的奠基論文;重點讀六角晶格、拓撲組織、地標錨定與 path integration 線索。Nature
- Sargolini et al. (2006), “Conjunctive representation of position, direction, and velocity in entorhinal cortex” — 了解 grid、head direction 與 velocity 訊號如何在同一迴路中交會。Science / DOI
- Stensola et al. (2012), “The entorhinal grid map is discretized” — 理解 grid modules、多尺度與內嗅皮質組織。Nature / DOI
機制模型與系統修正
- Solstad, Moser & Einevoll (2006), “From grid cells to place cells: A mathematical model” — 讀一個經典前向模型:多個 grid inputs 如何組合出單一 place field。Hippocampus / DOI
- Fuhs & Touretzky (2006), “A spin glass model of path integration in rat medial entorhinal cortex” — continuous attractor 路線的經典模型。Journal of Neuroscience / DOI
- Burak & Fiete (2009), “Accurate path integration in continuous attractor network models of grid cells” — 把網路動力學、噪聲與 path-integration accuracy 放在一起分析。PLOS Computational Biology
- Bonnevie et al. (2013), “Grid cells require excitatory drive from the hippocampus” — 了解海馬迴回饋如何修正單向座標產生器的直覺。Nature Neuroscience / PubMed
- Krupic et al. (2015), “Grid cell symmetry is shaped by environmental geometry” — 重要的反例:grid pattern 會被環境邊界扭曲。Nature
人類、抽象任務與 AI 延伸
- Jacobs et al. (2013), “Direct recordings of grid-like neuronal activity in human spatial navigation” — 人類臨床電極中的單神經元 grid-like activity。Nature Neuroscience
- Constantinescu et al. (2016), “Organizing conceptual knowledge in humans with a grid-like code” — 群體 fMRI 的抽象概念 grid-like signal;要和單神經元證據分開讀。Science
- Aronov et al. (2017), “Mapping of a non-spatial dimension by the hippocampal–entorhinal circuit” — 老鼠在聲音頻率任務中使用海馬迴—內嗅皮質迴路的非空間表徵。Nature
- Banino et al. (2018), “Vector-based navigation using grid-like representations in artificial agents” — 了解 grid-like representation 如何在特定深度學習導航任務中出現並發揮作用。Nature
最後的判斷:grid cells 是座標紙,還是關係運算器?
把 grid cells 稱為大腦的 GPS,可以快速傳達它和定位的關係,但這個比喻不能取代機制證據。比較穩妥的總結是:研究已經建立了週期性空間放電、尺度模組與環境依賴性的觀察;模型則提出,這些結構可能讓位置與位移的連續更新變得容易計算。
grid code 也不是一把不會變形的尺。它會受到邊界、動物的運動策略、海馬迴回饋與任務結構影響。到目前為止,最值得保留的結論是:grid cells 提供了一組研究空間表示與路徑整合的候選基底;它是否、以及如何被重新利用來表示非空間關係,仍需要比 grid-like activity 更直接的機制證據。
References
- O’Keefe, J., & Dostrovsky, J. (1971). The hippocampus as a spatial map: Preliminary evidence from unit activity in the freely-moving rat. Brain Research, 34, 171–175.
- Fyhn, M. et al. (2004). Spatial representation in the entorhinal cortex. Science, 305, 1258–1264.
- Hafting, T. et al. (2005). Microstructure of a spatial map in the entorhinal cortex. Nature, 436, 801–806.
- Sargolini, F. et al. (2006). Conjunctive representation of position, direction, and velocity in entorhinal cortex. Science, 312, 758–762.
- Solstad, T., Moser, E. I., & Einevoll, G. T. (2006). From grid cells to place cells: A mathematical model. Hippocampus, 16, 1026–1031.
- Fuhs, M. C., & Touretzky, D. S. (2006). A spin glass model of path integration in rat medial entorhinal cortex. Journal of Neuroscience, 26, 4266–4276.
- Burgess, N., Barry, C., & O’Keefe, J. (2007). An oscillatory interference model of grid cell firing. Hippocampus, 17, 801–812.
- Burak, Y., & Fiete, I. R. (2009). Accurate path integration in continuous attractor network models of grid cells. PLOS Computational Biology, 5, e1000291.
- Stensola, H. et al. (2012). The entorhinal grid map is discretized. Nature, 492, 72–78.
- Jacobs, J. et al. (2013). Direct recordings of grid-like neuronal activity in human spatial navigation. Nature Neuroscience, 16, 1188–1190.
- Bonnevie, T. et al. (2013). Grid cells require excitatory drive from the hippocampus. Nature Neuroscience, 16, 309–317.
- Krupic, J. et al. (2015). Grid cell symmetry is shaped by environmental geometry. Nature, 518, 232–235.
- Kropff, E. et al. (2015). Speed cells in the medial entorhinal cortex. Nature, 523, 419–424.
- Doeller, C. F., Barry, C., & Burgess, N. (2010). Evidence for grid cells in a human memory network. Nature, 463, 657–661.
- Constantinescu, A. O., O’Reilly, J. X., & Behrens, T. E. J. (2016). Organizing conceptual knowledge in humans with a grid-like code. Science, 352, 1464–1468.
- Aronov, D., Nevers, R., & Tank, D. W. (2017). Mapping of a non-spatial dimension by the hippocampal–entorhinal circuit. Nature, 543, 719–722.
- Banino, A. et al. (2018). Vector-based navigation using grid-like representations in artificial agents. Nature, 557, 429–433.
- Buzsáki, G., & Moser, E. I. (2013). Memory, navigation and theta rhythm in the hippocampal-entorhinal system. Nature Neuroscience, 16, 130–138.
- The 2014 Nobel Prize in Physiology or Medicine: The Brain’s Navigational Place and Grid Cell System.